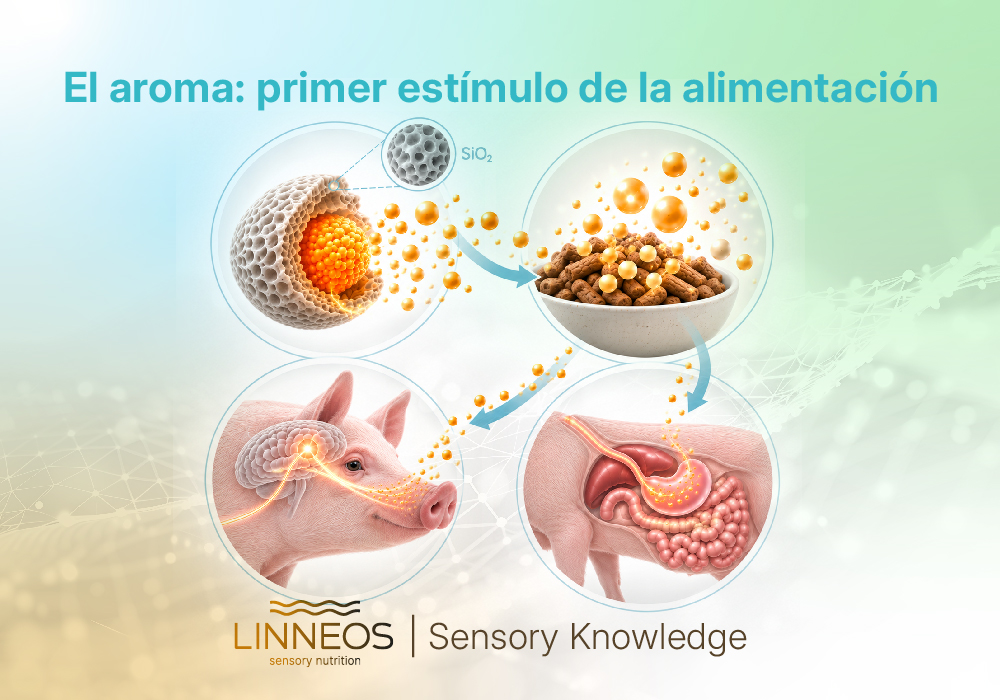
La neurobiología de la olfacción en la ingesta animal
Solemos asociar la palatabilidad únicamente al sabor. Sin embargo, la atracción del animal hacia un alimento comienza antes del primer bocado: inicia en el sentido del olfato.
Cuando se analiza la nutrición animal, la atención suele centrarse en el equilibrio nutricional —los porcentajes óptimos de proteína, grasa, fibra y cenizas—, la digestibilidad y la eficiencia metabólica. Sin embargo, antes de que el alimento sea ingerido y metabolizado, debe ser aceptado. En este primer contacto, el olfato actúa como el sensor primario y determinante de la ingesta.
Los compuestos volátiles permiten reconocer el alimento, anticipar su valor nutritivo e incluso activar respuestas fisiológicas relacionadas con el apetito y la digestión.
¿Qué ocurre cuando un animal huele el alimento?
Existe la creencia difundida de que el 80% del sabor depende del aroma. Aunque ese porcentaje carece de evidencia científica sólida, hay pleno consenso en que la olfacción retronasal desempeña un papel fundamental en la percepción del flavor (la experiencia sensorial integrada que combina olor, gusto, textura y sensaciones trigeminales) (Hummel, 2008; Hummel et al., 2012; Murphy et al., 1977). El olor constituye la primera información que recibe el cerebro sobre lo que está a punto de ingerir.
El proceso olfativo es una cascada neurofisiológica de alta velocidad que conecta directamente el ambiente externo con el cerebro emocional e instintivo del animal:
- Captación de volátiles: Los compuestos aromáticos liberados por la matriz del pienso viajan por el aire (olfacción ortonasal) o ascienden por la cavidad nasofaríngea durante la masticación (olfacción retronasal).
- Activación de receptores: Estas moléculas se unen a los receptores olfativos situados en las neuronas sensoriales del epitelio nasal.
- Procesamiento neural: Las señales se transmiten al bulbo olfatorio y, de forma directa, al sistema límbico (especialmente a la amígdala y la corteza piriforme), evitando en primera instancia las vías tálamo-corticales conscientes.
Esta conexión anatómica convierte al olfato en el único sentido capaz de activar recuerdos, reducir la neofobia e inducir respuestas cefálicas digestivas (secreción salival, gástrica y pancreática) previas a la ingesta.
Aromas en alimentación animal: una estrategia sensorial comparada
- El olfato es el primer sentido implicado en la selección del alimento.
- Antes de existir percepción del sabor ya existe una evaluación olfativa.
- Esto ocurre tanto en animales domésticos como silvestres.
Las respuestas a los estímulos aromáticos no son uniformes en el reino animal; las distintas especies han desarrollado adaptaciones neurosensoriales únicas condicionadas por su evolución, anatomía y hábitos de alimentación (Roura et al., 2008; Ache & Young, 2005). Mientras que mamíferos omnívoros como el porcino y el canino, o carnívoros estrictos como los felinos domésticos muestran un marcado uso del olfato para seleccionar nutrientes específicos, los rumiantes y las aves procesan e integran las señales aromáticas mediante mecanismos muy distintos.
En la especie porcina destaca una elevada sensibilidad hacia matices dulces y umami, la cual puede aprovecharse estratégicamente desde las primeras etapas de vida. A través del fenómeno de la continuidad maternal, moléculas volátiles como el anetol o la vainillina añadidas a la dieta de la cerda logran impregnar la leche materna; replicar el mismo perfil aromático en el pienso de iniciación (creep feed) genera un reconocimiento por familiaridad que reduce significativamente el estrés y el ayuno post-destete (López-Vergé et al., 2021; Aagaard Schild & Rørvang, 2023; Jacela et al., 2010).
Por el contrario, en los pequeños y grandes rumiantes, el impacto del aroma se prolonga durante el proceso digestivo: la masticación y la rumia potencian de forma continua la olfacción retronasal. Esto permite que la adición de perfiles aromáticos específicos redefina sus preferencias, incrementando la ingesta de raciones altas en fibra o con materias primas de menor palatabilidad inicial (Baumont, 1996; Robertson et al., 2006; Vasta et al., 2012).
Por su parte, la nutrición en animales de compañía expone un claro contraste fisiológico entre caninos y felinos. Mientras que la preferencia de los perros se orienta hacia perfiles cárnicos, grasos y marcadamente umami, los gatos presentan una limitación genética única: al tener inactivo el gen del receptor dulce (Tas1r2), la aceptación del alimento no depende de los azúcares, sino de manera crítica de la fracción volátil y de aminoácidos específicos asociados al sabor cárnico (Li et al., 2005; Bradshaw, 2006).
Finalmente, la avicultura rompe con el mito tradicional que le atribuía una dependencia casi exclusiva de la vista y la textura. La literatura científica reciente confirma la presencia de un sistema olfativo funcional en las aves, clave para la discriminación fina del pienso y fundamental para garantizar la uniformidad de consumo en los lotes.
Aroma, memoria alimentaria y consumo voluntario
El olfato actúa como el principal modulador de la memoria hedónica en los animales. A través de la detección de perfiles aromáticos específicos (flavor profiles) —combinaciones únicas e identificables de moléculas volátiles—, el cerebro del animal registra una auténtica «huella dactilar olfativa». Este código de barras aromático es reconocido y recordado de forma inmediata, permitiéndole asociar dicho estímulo con las consecuencias metabólicas post-ingestivas de la dieta:
- Asociación positiva: Un aroma vinculado a un alto aporte energético, bienestar digestivo o la seguridad del aprendizaje maternal promueve un consumo recurrente, voluntario y confiado.
- Reducción de la neofobia alimentaria: Al presentar un alimento nuevo o un cambio de fórmula, la inclusión de un aroma familiar disminuye la neofobia, reduciendo la ansiedad y el tiempo que tarda el animal en realizar el primer consumo.
De la neurobiología a la solución práctica
Toda esta evidencia plantea una reflexión crítica en la nutrición animal moderna:
¿estamos formulando dietas únicamente para cubrir requerimientos nutricionales, o también para estimular los sistemas sensoriales que determinan la aceptación del alimento?
Una dieta perfectamente balanceada carece de valor si el animal la rechaza o reduce su ingesta. En nuestro día a día, existen múltiples escenarios donde la palatabilidad se ve severamente comprometida:
- Cambios frecuentes de materias primas: La fluctuación de ingredientes por costes u oportunidad altera el perfil olfativo habitual del pienso, generando rechazo imprevisto.
- Reducción de proteínas animales: La transición hacia dietas más vegetales suele introducir notas amargas o astringentes que reducen el atractivo del alimento.
- Inclusión de materias primas alternativas o subproductos: Ingredientes con alta variabilidad organoléptica que presentan notas no deseadas (off-notes).
- Dietas medicamentosas: La inclusión de antibióticos, antiparasitarios o premezclas correctoras altera fuertemente el sabor y olor original, provocando caídas bruscas del consumo.
- Periodos de estrés: Fases de transición (destete, reagrupamientos, estrés térmico) donde el apetito cae drásticamente y se requiere un estímulo sensorial superior para desencadenar la ingesta.
Conclusión:
La formulación nutricional y la estimulación sensorial no son estrategias independientes, sino complementarias. Comprender cómo los animales perciben el alimento permite diseñar dietas no solo equilibradas desde el punto de vista nutricional, sino también atractivas y aceptadas. Porque el éxito de una estrategia nutricional depende tanto de la formulación de la dieta como de la respuesta sensorial que esta provoca en el animal.
Comprender la respuesta sensorial de cada especie es el punto de partida indispensable para garantizar el éxito nutricional.
En la Parte 2 analizaremos cómo trasladar este conocimiento científico a la tecnología de formulación nutricional.
Referencias bibliográficas (Parte 1)
- Aagaard Schild, S. L., & Rørvang, M. V. (2023). Pig olfaction: the potential impact and use of odors in commercial pig husbandry. Frontiers in Animal Science, 4, 1144042.
- Ache, B. W., & Young, J. M. (2005). Olfaction: Diverse Species, Conserved Principles. Neuron, 48(3), 417–430.
- Baumont, R. (1996). Palatability and feeding behaviour in ruminants. A review. Annales de Zootechnie, 45(5), 385–400.
- Hummel, T. (2008). Retronasal Perception of Odors. Chemistry & Biodiversity, 5(6), 853–861.
- Hummel, T., Heilmann, S., et al. (2012). Retronasal perception of odors. Physiology & Behavior, 107(4), 484–487.
- Jacela, J. Y., DeRouchey, J. M., Tokach, M. D., Goodband, R. D., Nelssen, J. L., Renter, D. G., & Dritz, S. S. (2010). Feed additives for swine: Fact sheets – flavors and sweeteners. Journal of Swine Health and Production, 18(3), 132–136.
- López-Vergé, S., et al. (2021). Perinatal flavor learning and feed appetence in swine production. Animals, 11(4), 1052.
- Murphy, C., Cain, W. S., & Bartoshuk, L. M. (1977). Mutual masking of odor and taste components in olfactory-taste mixtures. Sensory Processes, 1(4), 320–329.
- Robertson, E., Gordon, I. J., & Pérez-Barbería, F. J. (2006). Preferences of sheep and goats for straw pellets treated with different food-flavouring agents. Small Ruminant Research, 63(1-2), 50–57.
- Roura, E., Humphrey, B., Tedó, G., & Ipharraguerre, I. (2008). Unfolding the codes of short-term feed appetence in farm and companion animals. Canadian Journal of Animal Science, 88(4), 541–558.
- Vasta, V., et al. (2012). Volatile organic compounds and palatability of concentrates fed to lambs and ewes. Small Ruminant Research, 105(1-3), 200–205.


